

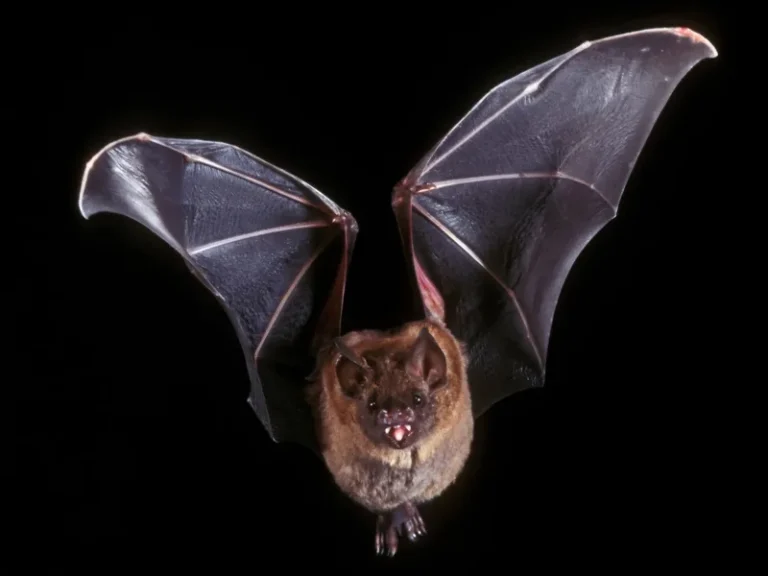

Здатність орієнтуватися в непроглядній темряві або каламутних океанічних глибинах без допомоги зору — один із найвизначніших тріумфів конвергентної еволюції на Землі. Ехолокація біосонар кажани дельфіни перетворила ультразвукові акустичні хвилі на високодеталізовану тривимірну картину навколишнього середовища. Досліджуючи нейрофізіологію слухової кори рукокрилих та зубатих китоподібних, сучасні науковці з’ясували: біологічний сонар здатний розраховувати дистанцію до мікроскопічної мішені з точністю до десятих часток міліметра та сканувати внутрішню структуру об’єктів швидше за будь-який військовий радар.
Акустична фізика біосонара: частотна модуляція та стала опорна хвиля
В основі природної ехолокації лежить непорушний фізичний закон відбивання акустичних хвиль від межі середовищ із різним акустичним опором. Проте у процесі еволюції тварини довели цей механізм до абсолютного технологічного апогею, виробивши дві ключові парадигми зондування: частотно-модульовані (FM) широкосмугові сигнали та монохроматичні сигнали зі сталою частотою (CF). Кожна стратегія являє собою бездоганний баланс між просторовою дальністю та роздільною здатністю.
Більшість гладконосих кажанів генерують надкороткі FM-імпульси тривалістю від однієї до трьох мілісекунд, частота яких стрімко ковзає вниз, наприклад, зі 100 до 25 кГц. Широкий частотний спектр забезпечує колосальний обсяг інформації про форму поверхні, шорсткість та просторову орієнтацію мішені. Потрапляючи до лівого й правого вуха з ледь помітною мікросекундною різницею в часі та спектрі, відбите ехо перетворюється в мозку мисливця на чітку тривимірну форму нічного метелика.
На противагу цьому, підковикові кажани спираються на тривалий CF-сигнал (близько 83 кГц), доповнений коротким FM-хвостом. Постійна частота є найкращим інструментом для розпізнавання рухомих об’єктів серед густої рослинності завдяки ефекту Доплера: тріпотіння крилець комахи модулює відбиту частоту, створюючи акустичне мерехтіння, яке жодна мімікрія не може приховати.
У морському середовищі фізика сонара функціонує в зовсім інших умовах: швидкість поширення звуку у воді становить близько 1500 м/с, що в 4,5 раза швидше за швидкість у повітрі. Дельфіни та інші зубаті кити блискуче пристосувалися до водного простору, генеруючи надзвичайно короткі клацання тривалістю від 40 до 100 мікросекунд із піковими частотами до 130 кГц. Така надмала тривалість виключає накладання вихідного імпульсу на ехо під час швидкісної гонитви за рибою.
Анатомічні випромінювачі: гортанні вібрації та ліпідна лінза дельфіна
Біомеханічні структури тварин, здатні генерувати ультразвук колосальної потужності, гідні подиву. У кажанів генератором акустичних коливань є спеціалізована гортань із надшвидкими голосовими складками, спроможними коливатися з частотою понад 200 герц. Перснещитоподібні м’язи рукокрилих мають найвищу концентрацію мітохондрій серед усіх скелетних м’язів ссавців, що унеможливлює м’язову втому під час багатогодинного полювання.
Для випромінювання акустичної енергії кажани застосовують або широко відкритий ротовий апарат, що діє як акустичний рупор, або вигадливі носові шкірні вирости («підкови» та «листки»). Ці носові структури слугують дифракційними фільтрами й хвилеводами, що формують вузький звуковий конус і відсікають бічні пелюстки випромінювання, які б спричиняли засліплюючі відлуння від дерев.
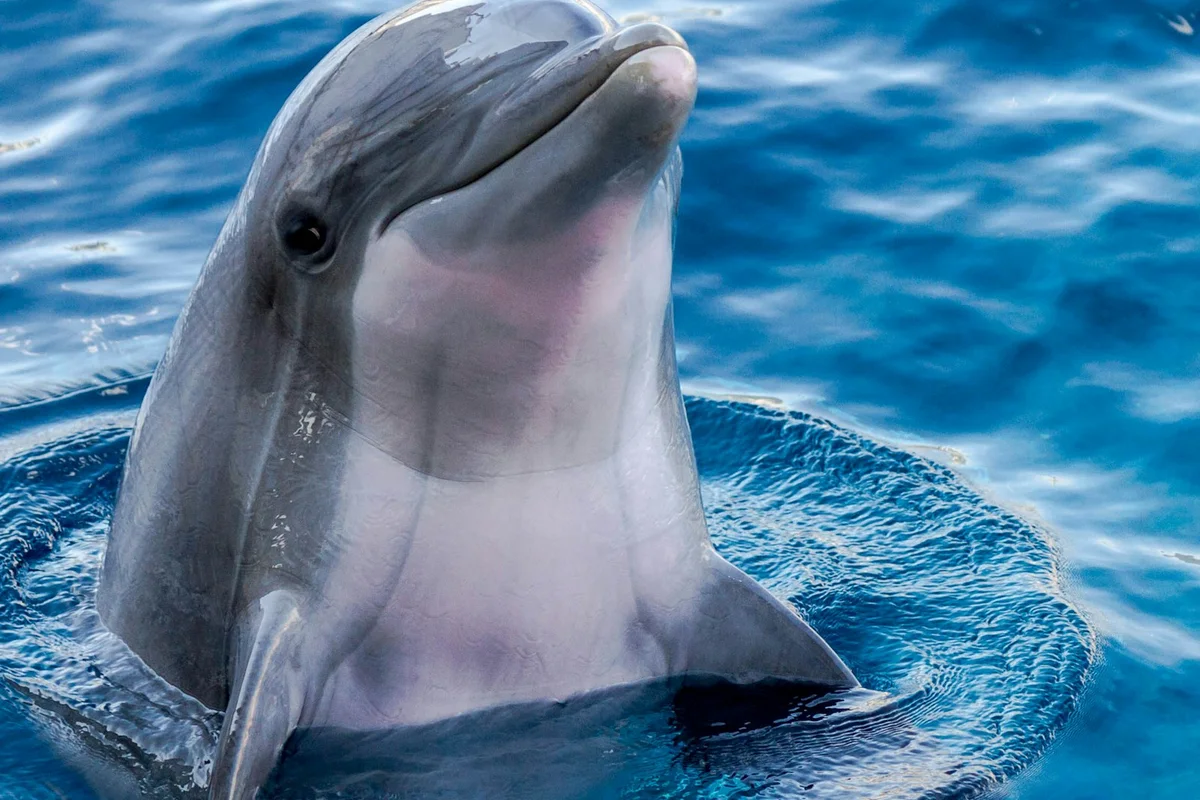
Анатомія китоподібних пішла зовсім іншим еволюційним шляхом. У дельфінів взагалі немає голосових зв’язок. У верхньому відділі носового тракту під дихалом у них сформувався складений комплекс так званих «мавпячих губ» (phonic lips) та сполучених повітряних мішків. Переганяючи повітря під тиском крізь ці м’язові клапани, дельфін змушує їх миттєво змикатися, продукуючи потужні акустичні клацання.
Згенерований імпульс спрямовується вперед через велику жирову подушку на лобі — мелон. Цей орган являє собою ідеальну акустичну лінзу. Периферія мелона містить щільні ліпіди, тоді як центральне ядро заповнене низькощільними розгалуженими жирними кислотами з меншою швидкістю звуку. Завдяки такому просторовому градієнту мелон концентрує ультразвукові хвилі у вузький промінь, що прошиває водну товщу на сотні метрів.
Нейробіологія сприйняття: акустична фовеа та просторові карти мозку
Як нервова система ехолокуючих ссавців декодує лавину відлунь, що надходять із затримками в частки мілісекунди? У кажанів уловлювання звуків виконують великі рухливі вушні раковини з розвиненим козелком (tragus). Геометрія раковини працює як просторовий амплітудно-фазовий фільтр: залежно від кута падіння хвилі за висотою одні частоти підсилюються, а інші гасяться, дозволяючи миттєво визначити вертикальні координати здобичі.
У завитці внутрішнього вуха підковикових кажанів еволюція створила дивовижне утворення — «акустичну фовеа». Це непропорційно розширена ділянка базилярної мембрани, де майже чверть усіх волоскових рецепторів налаштована на вузьку смугу частот завширшки лише 2 кГц навколо опорної частоти ехолокації (близько 83 кГц). Подібно до центральної ямки сітківки ока, що забезпечує гострий фокус зору, акустична фовеа дарує ультрависоку частотну вибірковість, фіксуючи відхилення еха всього на 0,05%.
У дельфінів зовнішні слухові ходи редуковані й перекриті щільною тканиною. Сприйняття звукових хвиль під водою здійснюється нижньою щелепою, порожнина якої заповнена специфічним ліпідним тілом. Звук із води легко проникає крізь тонку кісткову пластинку щелепи та спеціальним ліпідним акустичним трактом транслюється до капсули середнього та внутрішнього вуха, що підвішена на зв’язках і повністю акустично ізольована від черепа.
У головному мозку аналіз ехосигналів здійснюється ядрами нижніх горбків середнього мозку та первинною слуховою корою. Вчені виявили тут нейрони-детектори часових затримок. Кожна нервова клітина активується лише тоді, коли відбите ехо приходить через суворо фіксований проміжок після випромінювання (наприклад, рівно через 3,1 мілісекунди). Формуючи впорядковані стовпчики, ці клітини будують топографічну карту дальності об’єктів.
Мозок тварини-ехолокатора не просто реєструє відлуння — він синтезує просторові координати та текстуру перешкод із часовим розділенням у сотні наносекунд.
Професор Джеймс Сіммонс (James Simmons), дослідник біоакустики Браунівського університету
Конвергентна еволюція: паралелізм генетичного коду престину
Справжньою сенсацією еволюційної генетики стало розшифрування молекулярних механізмів біосонара. Предки рукокрилих та дельфінів розійшлися понад 85 мільйонів років тому, однак життєва потреба сприймати частоти понад 100 кГц призвела до ідентичних мутацій у їхніх білках.
Головним двигуном високочастотного слуху виступає білок престин (Prestin, ген SLC26A5), інтегрований у мембрани зовнішніх волоскових клітин завитки. Престин діє як надшвидкий п’єзоелектричний молекулярний наномотор: під зміною мембранного потенціалу він змінює свою довжину за частки мікросекунди, забезпечуючи механічне підсилення коливань базилярної мембрани у тисячі разів.
Порівняння послідовностей ДНК показало приголомшливий збіг: 14 ключових амінокислотних замін у молекулі престину дельфінів виявилися абсолютно тотожними змінам у підковикових кажанів. У звичайних ссавців престин не здатен скорочуватися на частотах понад 20 кГц через цитоплазматичний опір, але конвергентні мутації знизили молекулярну інертність білка, розширивши чутливість слуху до 160 кГц.
Паралельні адаптивні мутації виявлені й в інших слухових протеїнах, зокрема Cadherin-23 та OTOF (отоферліні), що забезпечують синаптичну передачу імпульсів. Це фундаментальне відкриття довело біологам: простір можливих біофізичних рішень для надвисокочастотної акустики у природі суворо детермінований законами фізики, і еволюція завжди обирає єдиний найефективніший молекулярний маршрут.
Біоміметика: від природного сонара до автономних роботів та медицини
Вивчення біосонара дельфінів та кажанів відкрило нову еру в біоніці, навігації та медичній діагностиці. Інженери десятиліттями намагалися створити радар або сонар, здатний у придонній каламуті відрізнити порожнистий металевий бак від суцільної кам’яної брили такого самого розміру — завдання, з яким дельфін справляється за частки секунди.
Сучасні біоінспіровані сонарні платформи, спроєктовані за зразком нейромереж рукокрилих, відмовилися від прямокутної імпульсної форми на користь частотної модуляції та динамічної адаптації променя. Це дозволило скоротити енерговитрати сонарних модулів для підводних автономних дронів у 20 разів, істотно підвищивши дальність автономного плавання.
У повітряних безпілотниках ультразвукові датчики з алгоритмами компенсації доплерівського зсуву дають змогу мініатюрним дронам літати крізь густі чагарники на швидкості 40 км/год у суцільній темряві без супутникового зв’язку GPS. Нейроморфний процесор аналізує фазову інтерференцію відлунь від гілок, миттєво вибудовуючи безпечну траєкторію польоту.
В офтальмології та нейрохірургії принципи обробки біосонара втілилися в системах надвисокороздільного ультразвукового сканування (Super-Resolution US). Алгоритми деконволюції, аналогічні до роботи слухової кори дельфіна, дають змогу лікарям розрізняти судини діаметром у кілька мікрометрів у тканинах серця та мозку. Природа вкотре довела неперевершену досконалість власних інженерних винаходів.