

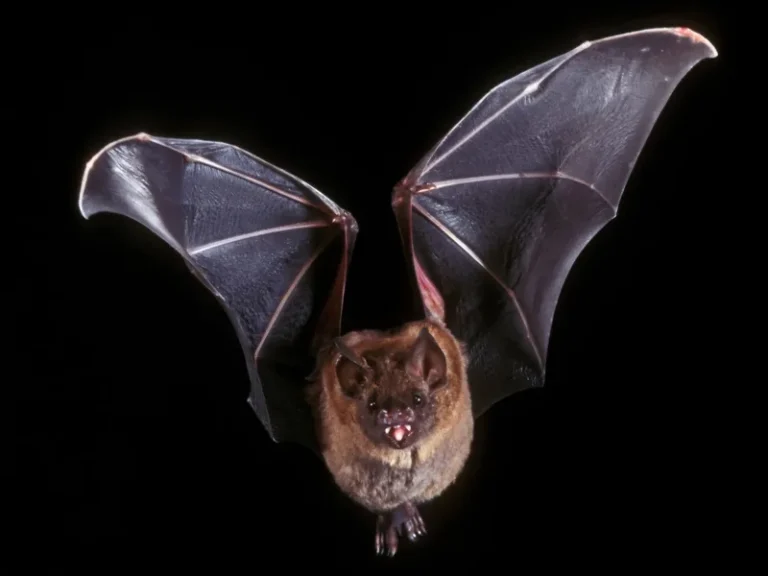

Способность ориентироваться в абсолютной темноте или мутных океанических глубинах без использования зрения — один из самых совершенных триумфов конвергентной эволюции. Эхолокация биосонар летучие мыши дельфины превратила акустические колебания ультразвукового спектра в детализированную трехмерную карту окружающей реальности. Исследуя нейрофизиологию слуховой коры рукокрылых и зубатых китоподібних, современные ученые выяснили: биологический гидролокатор способен определять дистанцию до микроскопической цели с точностью до десятых долей миллиметра и реконструировать ее внутреннюю плотность быстрее любого рукотворного военного радара.
Акустическая физика биосонара: частотная модуляция и постоянная несущая
В основе природной эхолокации лежит фундаментальный физический закон отражения акустических волн от границы сред с различным волновым сопротивлением. Однако животные довели этот принцип до абсолютного совершенства, разделившись на две основные стратегии зондирования: частотно-модулированные (FM) широкополосные импульсы и сигналы с постоянной частотой (CF). Каждая из этих стратегий представляет собой гениальный компромисс между дальностью обнаружения и разрешающей способностью.
Большинство гладконосых летучих мышей генерируют сверхкороткие широкополосные FM-сигналы длительностью от одной до трех миллисекунд, частота которых стремительно падает, например, со 100 до 25 кГц. Широкий спектр частот позволяет животному получить детальную информацию о геометрической форме объекта, шероховатости его поверхности и углах отражения. Попадая в уши с миллисекундной разницей во времени и спектральной окраске, эхо мгновенно трансформируется в сознании хищника в пространственный образ трепещущего крыла ночной бабочки.
Напротив, подковоносые мыши используют комбинацию длительного CF-сигнала (на частоте около 83 кГц) с коротким завершающим FM-хвостом. Постоянная частота идеально подходит для обнаружения движения на фоне неподвижной листвы благодаря эффекту Доплера: биение крыльев насекомого модулирует частоту отраженного сигнала, создавая акустическое «мерцание», которое невозможно замаскировать никаким камуфляжем.
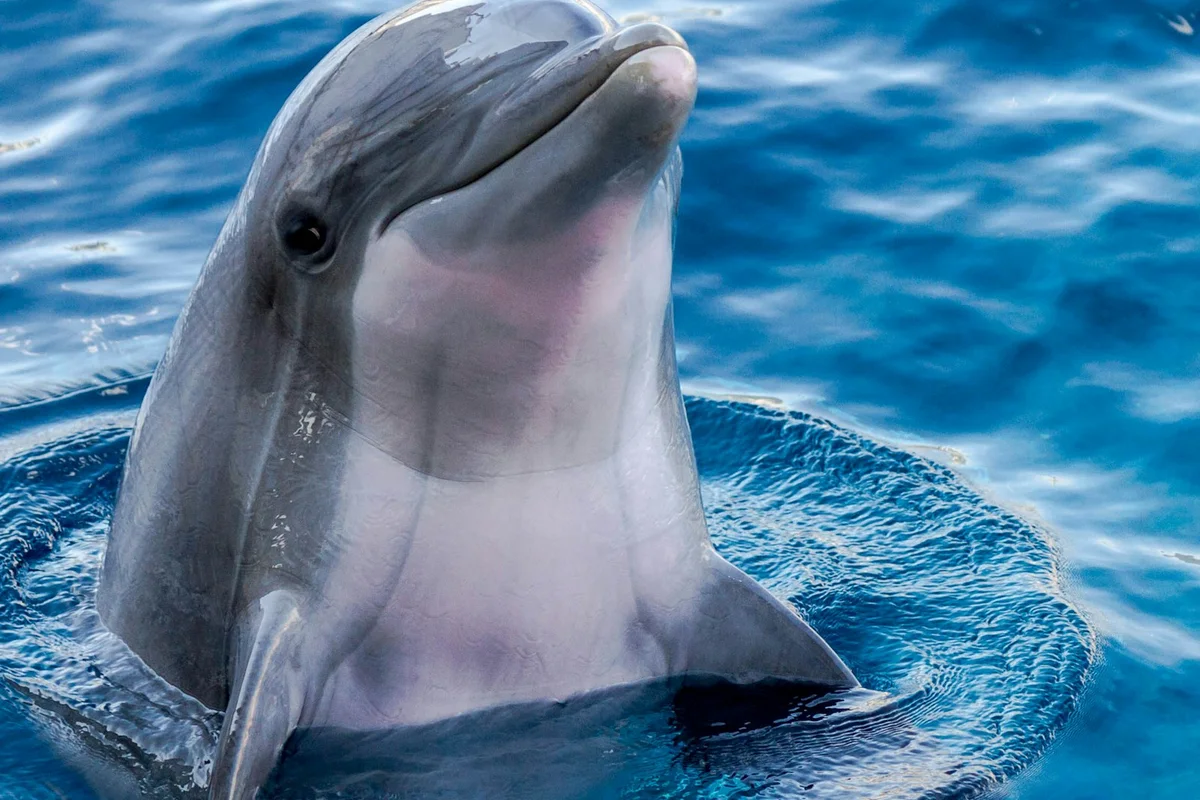
В водной стихии физика биосонара сталкивается с совершенно иными параметрами среды: скорость звука в морской воде составляет около 1500 м/с, что почти в пять раз быстрее, чем в воздухе, а плотность воды в 800 раз выше. Дельфины и зубатые киты адаптировались к этим условиям, генерируя сверхкороткие направленные широкополосные щелчки длительностью от 40 до 100 микросекунд с пиковой частотой от 40 до 130 кГц. Короткая длительность импульса предотвращает наложение прямого сигнала на отраженное эхо при сближении с преследуемой рыбой на расстояние в считанные сантиметры.
Анатомические излучатели: гортанные вибрации и жировая линза дельфина
Механизмы генерации столь мощных ультразвуковых волн представляют собой шедевры биомеханики. У летучих мышей источником звука служит модифицированная гортань со сверхбыстрыми голосовыми связками, способными сокращаться с частотой свыше 200 раз в секунду. Специализированные кольцещитовидные мышцы обладают высочайшей плотностью митохондрий и саркоплазматического ретикулума среди всех известных мышечных тканей млекопитающих, что обеспечивает взрывную сократимость без накопления молочной кислоты.
Для излучения звука в пространство рукокрылые используют либо широко распахнутый рот, формирующий рупорообразный акустический луч, либо причудливые носовые наросты («листоносы» и «подковы»). Носовые складки действуют как дифракционные решетки и резонансные фильтры, сужая диаграмму направленности звукового пучка и подавляя боковые лепестки излучения, которые могли бы вызвать паразитные отражения от земли или крон деревьев.
Анатомия китообразных пошла по совершенно иному, уникальному пути. У дельфинов полностью отсутствуют голосовые связки. Вместо этого в верхней части носового прохода под дыхалом располагается комплекс так называемых «обезьяньих губ» (phonic lips) и воздушных мешков. Прокачивая воздух под высоким давлением через эти мышечные клапаны, дельфин заставляет их вибрировать, генерируя мощнейшие механические щелчки.
Нейробиология приема: акустическая фовеа и вычислительные карты мозга
Как мозг успевает расшифровать каскад отраженных эхо-сигналов, возвращающихся с микросекундными задержками? Прием отраженного звука у рукокрылых осуществляется через подвижные ушные раковины сложной формы с развитым козелком (tragus). Ушная раковина работает как пространственный фазовый фильтр: в зависимости от угла прихода звука по вертикали определенные частоты спектра усиливаются или подавляются, позволяя мыши мгновенно определять высоту цели без поворота головы.
В улитке внутреннего уха подковоносов обнаружена феноменальная структура — «акустическая фовеа». Это гигантское непропорциональное расширение базилярной мембраны, где до 25% всех волосковых клеток настроены на узкий диапазон частот шириной всего в пару килогерц вокруг несущей частоты эхолокации (около 83 кГц). Подобно центральной ямке сетчатки глаза, обеспечивающей максимальную остроту зрения, акустическая фовеа улитки дает беспрецедентную частотную избирательность, фиксируя изменения частоты эха всего на 0,05%.
У дельфинов наружные слуховые проходы редуцированы и закрыты плотными пробками. Прием ультразвука осуществляется через нижнюю челюсть, заполненную особым акустическим жиром («челюстным жировым телом»). Звуковая волна из воды практически без потерь проникает через тонкую стенку челюстной кости (акустическое окно) и по жидкостному липидному волноводу передается непосредственно к тимпаноперической кости — слуховой капсуле среднего и внутреннего уха, изолированной от черепа пенистыми воздушными синусами.
В центральной нервной системе обработка эхолокационных данных возложена на нижние бугорки четверохолмия и слуховую кору. Здесь нейробиологи открыли специализированные «нейроны-детекторы задержек». Каждая клетка реагирует только тогда, когда после собственного крика животного эхо приходит с фиксированным интервалом (например, строго через 2,4 миллисекунды). Располагаясь упорядоченными колонками, эти нейроны формируют непрерывную карту глубин пространства, аналогичную зрительной коре.
Мозг эхолоцирующего животного не просто слушает звук — он вычисляет пространственные координаты и текстуру объектов с временным разрешением, достигающим сотен наносекунд.
Профессор Джеймс Симмонс (James Simmons), исследователь биоакустики Брауновского университета
Конвергентная эволюция: совпадение генетического кода престина
Одним из величайших открытий молекулярной генетики XXI века стало обнаружение глубокого параллелизма в геномах эхолоцирующих млекопитающих. Летучие мыши и дельфины разделились на древе эволюции более 85 миллионов лет назад, однако необходимость воспринимать ультразвуковые частоты свыше 100 кГц заставила природу переписать их белковые последовательности практически одинаково.
Ключевую роль в высокочастотном слухе играет белок престин (Prestin, кодируемый геном SLC26A5), расположенный в латеральных мембранах наружных волосковых клеток улитки. Престин работает как пьезоэлектрический молекулярный мотор: под воздействием электрического потенциала он меняет свою длину, вызывая механическое сжатие или удлинение клетки за доли микросекунды и усиливая колебания базилярной мембраны в тысячи раз.
Когда генетики секвенировали ген престина у летучих мышей и дельфинов, они были потрясены: 14 ключевых аминокислотных замен в молекуле престина у китообразных совпали с заменами у подковоносых летучих мышей до единой буквы. Белок обычных сухопутных млекопитающих не способен работать на частотах выше 20–30 кГц из-за вязкостного сопротивления цитоплазмы, но конвергентные мутации престина радикально снизили его внутреннюю инерцию, обеспечив усиление частот до 160 кГц.
Биомиметика: от эхолокации к медицинским сонарам и дронам
Изучение биосонара давно вышло за рамки зоологии и превратилось в передовое направление современной биомиметики и робототехники. Военные инженеры и гражданские разработчики десятилетиями пытались воспроизвести потрясающие параметры гидролокатора дельфинов, способного в мутной придонной воде мгновенно отличать полую металлическую сферу от монолитной алюминиевой болванки одинакового диаметра.
Традиционные рукотворные сонары тратят колоссальное количество энергии, посылая мощные акустические импульсы во всех направлениях, что создает сильную реверберацию от дна и поверхности. Биоинспирированные сонары нового поколения, созданные на основе модели слуховой коры рукокрылых, используют широкополосную частотную модуляцию и адаптивное управление формой луча, сокращая энергопотребление датчиков автономных подводных дронов в десятки раз.
В беспилотной авиации микро-лидары и ультразвуковые сенсоры, работающие по алгоритмам компенсации доплеровского сдвига, позволяют миниатюрным квадрокоптерам маневрировать в густом лесу на скорости до 50 км/ч в полной темноте без использования спутниковой навигации GPS. Анализируя фазовый сдвиг отраженных волн от тонких веток, нейроморфные процессоры дронов рассчитывают безопасный коридор полета за доли миллисекунды.
Не менее революционным является внедрение принципов биосонара в медицину. Ультразвуковые сканеры нового поколения (Super-Resolution Ultrasound) используют алгоритмы нейронной деконволюции, подсмотренные у дельфинов, позволяя визуализировать кровоток в капиллярах головного мозга толщиной всего несколько микрометров без введения токсичных рентгеноконтрастных препаратов. Природа в очередной раз доказала, что ее миллионолетние патенты превосходят самые смелые замыслы современной инженерии.